Синтетическая биология стремится создать искусственную клетку — систему, которая могла бы поддерживать обмен веществ, расти, копировать геном и размножаться, причём состояла бы из компонентов с известными функциями. Такая система помогла бы выяснить, какие молекулы и процессы необходимы для жизни, а также могла бы стать управляемой платформой для биотехнологии. Биоинженеры из Университета Миннесоты собрали синтетические клетки, в которых происходят основные процессы такого рода: питание, рост, репликация генома и экспрессия генов. Они также продемонстрировали влияние генотипа на фенотип и изменение частот генетических вариантов в популяции. Однако система остаётся зависимой от поступающих извне готовых компонентов, а размножение в основном обеспечивали экспериментаторы.
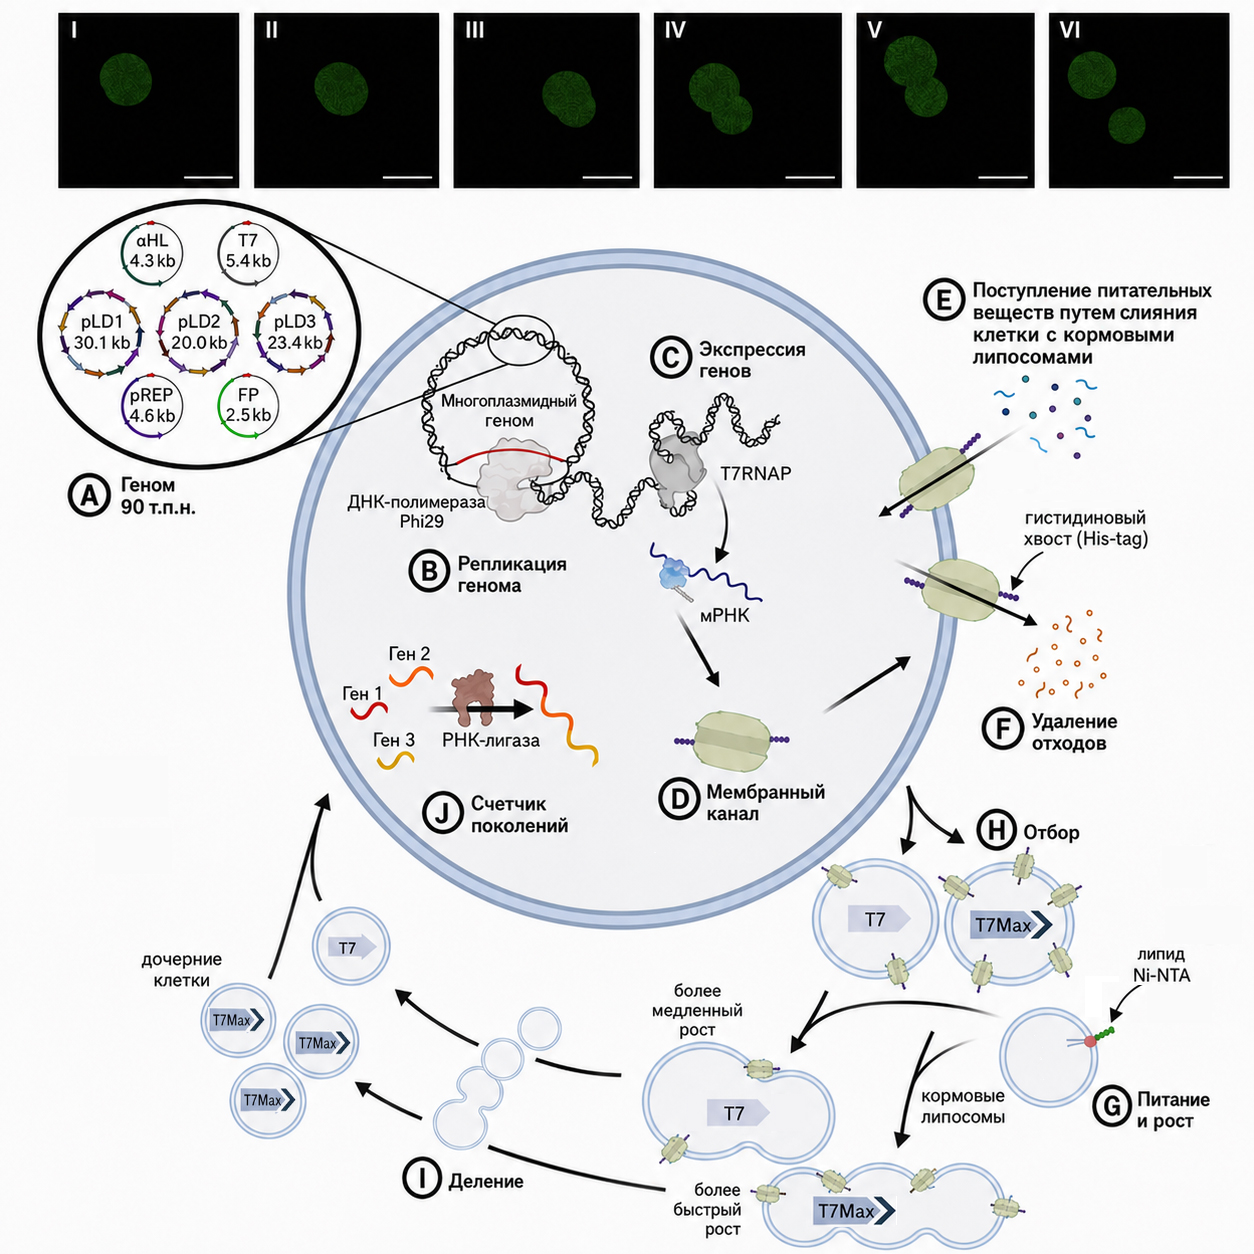
Геном клеток состоит из семи плазмид общей длиной около 90 тысяч пар оснований и кодирует часть белков, необходимых для репликации ДНК, транскрипции и трансляции. Клетки получают недостающие компоненты, в том числе рибосомы, липиды, ферменты и низкомолекулярные вещества, с кормовыми липосомами. Рост и размножение синтетических клеток удалось проследить на протяжении пяти поколений; кроме того, исследователи показали, что генетический вариант, помогающий клеткам эффективнее питаться, может получать преимущество при ограниченном количестве пищи.
Зачем создавать искусственные клетки
Искусственные клетки могли бы стать программируемыми микрофабриками для производства ферментов, лекарств и других ценных веществ или миниатюрными биороботами, выполняющими задачи внутри организмов и в окружающей среде. В отличие от генетически модифицированной бактерии, такая клетка не обязана нести всё наследие эволюции: в неё можно включить нужные генетические программы и выбранный исследователями минимум систем самообеспечения. В идеале это позволило бы сделать клетку эффективной и управляемой.
Сборка клетки «с нуля» из компонентов с известными функциями — также способ проверить, насколько хорошо мы понимаем, что такое жизнь. Успех в этой области важен для синтетической биологии и может помочь изучать происхождение жизни, хотя создание искусственной клетки и моделирование абиогенеза — разные задачи.
Существуют два основных подхода. Нисходящий, или top-down, начинается с живой клетки: из её генома последовательно удаляют гены, необязательные для жизни в благоприятных лабораторных условиях. По этому пути работает группа Крейга Вентера, которая сокращает геномы бактерий рода Mycoplasma. Даже в минимизированном бактериальном геноме остаются гены, функции которых неизвестны: эксперименты показывают, что без них бактерия не выживает, но зачем именно они нужны, пока неясно.
Восходящий подход, или bottom-up, состоит в сборке клеткоподобных систем из неживых компонентов — молекул и молекулярных комплексов. Их помещают в липосомы, замкнутые пузырьки с липидной мембраной, которые также называют протоклетками. Этот подход позволяет лучше контролировать процессы внутри искусственной клетки.
Исследователям удавалось воспроизводить в липосомах отдельные клеточные функции: репликацию ДНК, экспрессию генов, биохимические реакции, получение веществ из внешней среды, рост и деление. Например, клетки с шестью генами могли копировать ДНК и синтезировать фосфолипиды — компоненты мембраны, — но не росли и не размножались. Другие системы получали вещества из среды и росли или делились, но не объединяли все ключевые функции в одной клетке.
В рассматриваемой работе авторы стремились соединить питание, рост, размножение, репликацию ДНК и экспрессию генов, а также добиться того, чтобы наследственные различия влияли на репродуктивный успех. Согласно классическому определению NASA, жизнь — это «самоподдерживающаяся химическая система, способная к дарвиновской эволюции». Для эволюции разные варианты генов должны обеспечивать разную скорость размножения в заданных условиях среды.
Устройство синтетической клетки
Основа системы — липосома диаметром в несколько микрометров с двухслойной липидной мембраной. В неё входят ненасыщенные фосфолипиды DOPC (диолеоилфосфатидилхолин) и DOPE (диолеоилфосфатидилэтаноламин), а также холестерин. Такой состав делает мембрану достаточно устойчивой и одновременно эластичной, способной искривляться и сливаться с другими мембранами. Это сложная мембрана, мало похожая на предполагаемые примитивные оболочки первых протоклеток: исследование посвящено синтетической биологии, а не воспроизведению происхождения жизни.
Внутри находится искусственный геном длиной 90,3 тысячи пар нуклеотидов. Он разделён на семь кольцевых плазмид и кодирует около 40 белков, в том числе:
- 20 аминоацил-тРНК-синтетаз — ферментов, присоединяющих аминокислоты к соответствующим транспортным РНК;
- 10 других белков, необходимых для трансляции: факторов инициации и элонгации, фактора терминации, фактора рециклизации рибосом RRF и метионил-тРНК-формилтрансферазы;
- ДНК-полимеразу бактериофага Φ29, которая копирует геном;
- РНК-полимеразу фага T7, обеспечивающую транскрипцию;
- зелёный флуоресцентный белок GFP, помогающий наблюдать за клетками;
- модифицированный альфа-гемолизин αHL — мембранный белок, участвующий в питании клетки.
Геном кодирует лишь часть компонентов, необходимых системе. В нём нет генов рибосомных РНК и рибосомных белков, цитоскелета, ферментов энергетического метаболизма, синтеза липидов, аминокислот, нуклеотидов и АТФ. Поэтому многие нужные молекулы изначально помещали внутрь липосом, а затем регулярно добавляли с пищей.
Исходное содержимое липосомы — модифицированная система PURE, бесклеточная смесь для транскрипции и трансляции. В отличие от бактериального лизата, PURE собирают из отдельных очищенных компонентов; известны их перечень и концентрации. Низкомолекулярные вещества добавляют в виде химических реактивов, а белки получают из рекомбинантных клеток E. coli. В смесь входят транспортные РНК и готовые рибосомы, также выделенные из E. coli.
Таким образом, геном позволяет клетке синтезировать некоторые важные белки, но для запуска и продолжения работы системе нужны белки и другие компоненты, поступающие извне. Внутри липосомы также находятся все 20 аминокислот, четыре рибонуклеозидтрифосфата — АТФ, ГТФ, ЦТФ и УТФ, — четыре дезоксирибонуклеозидтрифосфата для репликации ДНК, набор транспортных РНК, соли калия и магния, креатинфосфат как источник химической энергии для регенерации нуклеозидтрифосфатов и вспомогательные вещества.
Как клетка получает пищу и растёт
Кормовые липосомы — небольшие мембранные пузырьки, содержащие почти готовую порцию «цитоплазмы» с рибосомами и другими необходимыми компонентами, но без ДНК. Их мембрана почти совпадает по составу с мембраной синтетической клетки, однако содержит дополнительный липид Ni-NTA, связывающий цепочки из нескольких остатков гистидина.
Белок αHL синтезируется внутри синтетической клетки и встраивается в её мембрану. Его модифицировали так, чтобы у него был «гистидиновый хвост» — пептид из шести остатков гистидина. Этот хвост связывается с липидом Ni-NTA на кормовой липосоме. Мембраны сближаются и сливаются, а их содержимое объединяется. Так клетка получает вещества для роста, а её мембрана увеличивается за счёт мембраны кормовой липосомы.
В кормовые липосомы добавляли также короткие молекулы РНК — метки каждого раунда кормления. Они служили счётчиком поколений: разные метки позволяли определить, участвовала ли клетка в каждом цикле.
Такое питание отличается от обычного клеточного. Живые клетки могут поглощать сложные молекулы и готовые молекулярные комплексы, но обычно расщепляют их на простые составляющие и сами строят нужные белки, рибосомы и мембраны. Синтетическая клетка получает значительную часть оборудования уже собранной и использует её без переваривания и последующего биосинтеза. Исследователи называют систему «идеальным гетеротрофом», подчёркивая её зависимость от готовых молекул и комплексов.
Белок αHL создаёт прямую связь между генотипом и важным признаком клетки — скоростью питания. Чем больше αHL производит клетка, тем эффективнее она связывает кормовые липосомы и тем больше ресурсов получает. Это влияет на увеличение объёма клетки и рост её мембраны.
Поры αHL пропускают небольшие молекулы. Поэтому клетка обменивается аминокислотами, нуклеотидами и другими низкомолекулярными веществами с окружающим раствором без слияния с кормовой липосомой. Перенос пассивный: у клетки нет насосов, вещества движутся по градиенту концентрации. Рибосомы, белки, ДНК и РНК через поры не проходят и поступают только при слиянии мембран. У клетки также нет специальных механизмов выведения отходов: небольшие молекулы выходят через каналы простой диффузией, а крупные остаются внутри.
Основные реакции в системе сводятся к трём процессам: РНК-полимераза T7 синтезирует матричные РНК, рибосомы при помощи факторов трансляции производят белки, а полимераза Φ29 копирует геномную ДНК. На эти процессы расходуются поступающие с пищей нуклеотиды, аминокислоты и химическая энергия. Синтезированный αHL встраивается в мембрану и помогает клетке получать следующую порцию пищи.
Собственной энергетики в привычном смысле у системы нет: в ней не происходят гликолиз, фотосинтез или окислительное фосфорилирование, отсутствуют электронно-транспортная цепь, протонный градиент и АТФ-синтаза. АТФ и другие нуклеозидтрифосфаты поступают в готовом виде. Исследователи насыщали внешний раствор аминокислотами, нуклеотидами, солями и энергетическими субстратами примерно в тех же концентрациях, что и содержимое клеток. Иначе через поры αHL могло бы не только поступать питание, но и вытекать содержимое клетки.
Рост и размножение
Исследователи продемонстрировали пять последовательных циклов питания, роста и размножения. Эти циклы можно считать поколениями, но клетки не делились самостоятельно: разделение обеспечивали экспериментаторы.
В каждом цикле к суспензии синтетических клеток добавляли кормовые липосомы. Клетки сливались с ними в течение 12 часов при осторожном помешивании. Подросшие клетки пропускали через фильтр с порами диаметром 2 мкм. Крупные пузырьки деформировались и механически разделялись на более мелкие — условные дочерние клетки. Затем к ним добавляли новую порцию кормовых липосом. Таким образом, размножение представляло собой принудительное дробление, а момент разделения задавал исследователь, а не сама клетка.
Последовательность повторили пять раз. В клетках третьего, четвёртого и пятого поколений проверяли сохранность генома, экспрессию генов и наличие РНК-меток. Присутствие всех семи плазмид указывало на успешную репликацию ДНК, а количество GFP — на экспрессию генов. Все пять меток свидетельствовали, что клетка или её предки питались во всех пяти циклах.
После пятого раунда полный набор из семи плазмид обнаружили примерно у 30% проанализированных клеток. Синтез GFP регистрировался у 60% клеток, и примерно у 60% нашли полный набор РНК-меток. Это показывает, что система худо-бедно выдержала пять циклов роста и принудительного разделения.
В другом опыте исследователи добились разделения без пропускания клеток через фильтр. В геном добавили дополнительный ген, кодирующий вариант αHL с меткой FLAG вместо гистидинового хвоста. FLAG — пептидная метка из восьми аминокислот, широко используемая в биоинженерии. Клетки производили обе версии белка: His-αHL для питания и FLAG-αHL, который должен был участвовать в делении.
Чтобы задействовать FLAG-αHL, в раствор добавляли биотинилированное антитело к FLAG и стрептавидин — белок, связывающийся с биотином. Антитело прикреплялось к FLAG на мембране, а к нему — стрептавидин. Скопление крупных белковых конструкций искривляло мембрану и повышало вероятность разделения пузырька на два. Чем больше FLAG-αHL производила клетка, тем выше была вероятность разделения или тем чаще оно происходило; методика не позволяла различить эти варианты.
Количество FLAG-αHL определялось промотором — регуляторной последовательностью, которая привлекает РНК-полимеразу и управляет экспрессией гена. Это показывает, что геном мог влиять на деление клетки. Однако такое «генетически контролируемое» деление не удалось воспроизвести в последовательности поколений: была продемонстрирована только принципиальная возможность этого механизма.
Генетический вариант и естественный отбор
Исследователи проверили, может ли генетическое различие влиять на успех клеток в условиях конкуренции за пищу. Поскольку питание зависит от белка His-αHL, можно ожидать, что при дефиците кормовых липосом преимущество получат клетки, производящие больше этого белка.
Для опыта создали популяцию из двух типов клеток. У половины ген His-αHL находился под управлением сильного промотора T7max, обеспечивающего высокий уровень экспрессии. У остальных тот же ген контролировался слабым промотором T7. Чтобы различать типы при подсчёте, клетки производили флуоресцентные белки разных цветов. В дополнительном опыте цветовые метки поменяли местами, чтобы проверить, не влияют ли они сами на результат.
Популяцию с равным исходным соотношением типов кормили и размножали, пропуская через фильтр, на протяжении пяти поколений. Эксперименты проводили при избытке кормовых липосом и при их дефиците. При избытке пищи доля клеток T7max выросла с 50 до 60%. Значит, они росли и размножались быстрее клеток T7, хотя преимущество было небольшим.
Когда количество кормовых липосом уменьшили в 10 раз, различие усилилось: за пять поколений доля T7max выросла до 70%, а доля T7 снизилась до 30%.
Изменение частоты аллеля в популяции от поколения к поколению — элементарный акт микроэволюции. В опыте сильный промотор давал клеткам фенотипическое преимущество, которое становилось заметнее при конкуренции за ограниченный ресурс. Однако генетическое разнообразие в популяции создали искусственно, а не получили в результате спонтанных мутаций.
Значение работы и ограничения
Работа показывает, насколько далеко продвинулась биоинженерия искусственных клеток: в одной системе удалось объединить многоплазмидный геном, экспрессию генов, питание, рост и изменение частот генетических вариантов. Но полученные клетки пока нельзя считать автономными организмами. У них нет подобия нормального метаболизма, и они полностью зависят от готовых рибосом, белков и низкомолекулярных веществ в кормовых липосомах. Пять поколений удалось получить только с помощью механического разделения пузырьков, а не самопроизвольного клеточного деления.
Остаются нерешёнными распределение копий генома между потомками, регуляция экспрессии, протеостаз — поддержание правильного состава и состояния белков — и биосинтез большинства необходимых компонентов внутри клетки. Без него даже небольшое изменение состава кормовых липосом может оказаться для системы губительным.
Исследование не воспроизводит исторический путь возникновения жизни: авторы проектировали клетку и использовали сложные компоненты, заимствованные у современных организмов, — белки, рибосомы, фосфолипиды и коферменты. Тем не менее такие эксперименты помогают проверять, какие функции нужны для устойчивого воспроизводства примитивной клетки и как должны согласовываться репликация наследственного материала, рост мембраны, питание и деление.
Главное достижение — объединение в одной системе из компонентов с известным составом репликации генома длиной около 90 тысяч пар оснований, генетически управляемого питания и роста, последовательных поколений, конкуренции и отбора, а также механизма размножения, скорость которого зависела от генотипа. До полноценных искусственных организмов ещё далеко, но такие системы в перспективе могут найти применение в качестве программируемых микрореакторов, биосенсоров и средств локального производства и доставки молекул.